一个催化酶找了30年,终于被“人肉”出来了!Nature | DHRS7就是那个失落的基因,还藏着炎症调控的双重开关
摘要
炎症是人体对抗损伤、病原体入侵的重要防御武器,但这套防御体系自带天然短板,很容易发生过度激活,造成 “敌我不分” 的自身组织损伤。以炎症性肠病为代表的黏膜炎症疾病,全球患病人数已经突破 500 万,并
正文
炎症是人体对抗损伤、病原体入侵的重要防御武器,但这套防御体系自带天然短板,很容易发生过度激活,造成 “敌我不分” 的自身组织损伤。以炎症性肠病为代表的黏膜炎症疾病,全球患病人数已经突破 500 万,并且在发展中国家发病率仍在持续走高;哮喘影响全球大约 2.6 亿人口,每年造成超 40 万人死亡。这类疾病的共同底层特征,就是免疫系统在没有明确外来病原体入侵的情况下依旧过度活化,炎症的启动和终止调控机制彻底失衡。
三十多年来科学界已经知道,有一种脂质信号分子可以招募白细胞奔赴损伤位置,但负责合成该分子的关键编码基因始终悬而未决,限制了人们对炎症平衡调控的深入理解。
发表于 Nature 的重磅研究,来自纪念斯隆‑凯特琳癌症中心的科研团队终于破解了这个尘封三十余年的科学谜题。研究结果刷新了既往认知,这条脂质信号通路并非只有召唤免疫细胞的单一功能,它是一套双向调控系统,在拉响损伤警报召集免疫细胞的同时,还会为周围健康上皮细胞建立保护屏障,抵御炎症带来的附带损伤。
故事可以追溯到 1992 年,麦吉尔大学的科研团队发现了脂质信号分子5‑oxoETE,全称 5‑oxo‑6,8,11,14‑二十碳四烯酸。
该分子的生理功能十分明确,当机体出现感染或者组织损伤,5‑oxoETE 就作为化学警报信号,招募具备杀菌能力的白细胞迁移至受损部位。生化实验证实体内存在一种双向酶,既可以生成也能够降解 5‑oxoETE,但当时科研人员始终未能找到编码这一蛋白的人类基因。缺少对应的基因信息,研究者无法在实验体系里对它开展基因编辑操控,极大阻碍对该分子生理、病理作用的挖掘,科研人员只能依据生化反应特征,把它命名为 5‑HEDH,这个无名代号就这样沿用了三十余年。
纪念斯隆‑凯特琳癌症中心 Philipp Niethammer 课题组的博士后 Yanan Ma 推动了这项研究的关键突破,该实验室长期聚焦伤口修复、炎症应答与组织再生机制。既往研究已经阐明,病原体入侵时 5‑oxoETE 释放警报信号,募集白细胞抵达病灶,免疫细胞释放大量毒性物质清除病原体,但一旦调控失控,这些毒性物质同样会杀伤自身健康组织。但由于这条通路的核心催化酶身份不明,相关研究一直陷入瓶颈。
研究团队意识到传统啮齿类动物模型存在先天缺陷,小鼠、大鼠虽然被广泛用于生物医学研究,和人类基因相似度约 80%,但啮齿动物体内缺失识别 5‑oxoETE 的功能性受体 OXER1,整条信号通路在小鼠体内是断裂失效的。而斑马鱼完整保留这套保守通路,是开展该课题的理想模式生物。
研究人员先在人类培养细胞中,逐个沉默候选基因,观察酶活性变化;当敲低DHRS7基因之后,细胞生成 5‑oxoETE 的酶活性几乎完全消失,至此,长期寻找的 5‑HEDH 终于被确认,它就是短链脱氢‑还原酶家族蛋白 DHRS7。后续实验验证,啮齿类同源 DHRS7 蛋白几乎不具备该催化活性,和啮齿动物受体丢失的演化现象彼此呼应。
与此同时,同实验室的另一位博士后 Miklos Lengyel 利用斑马鱼结肠炎模型解析通路功能。hcar1‑4是人类OXER1基因在斑马鱼中的同源基因,编码 5‑oxoETE 的识别受体。
按照常规逻辑,敲除受体就相当于切断炎症警报,肠道炎症理应得到缓解,但实验结果恰恰相反:在没有外来病原体感染的条件下,突变斑马鱼肠道自发出现炎症损伤。
更值得玩味的是,单纯耗竭中性粒细胞并不能改善肠道病变,说明炎症并不是免疫细胞过度浸润直接造成。而当敲除dhrs7,抑制 5‑oxoETE 合成,斑马鱼的肠道炎症反而进一步加重。
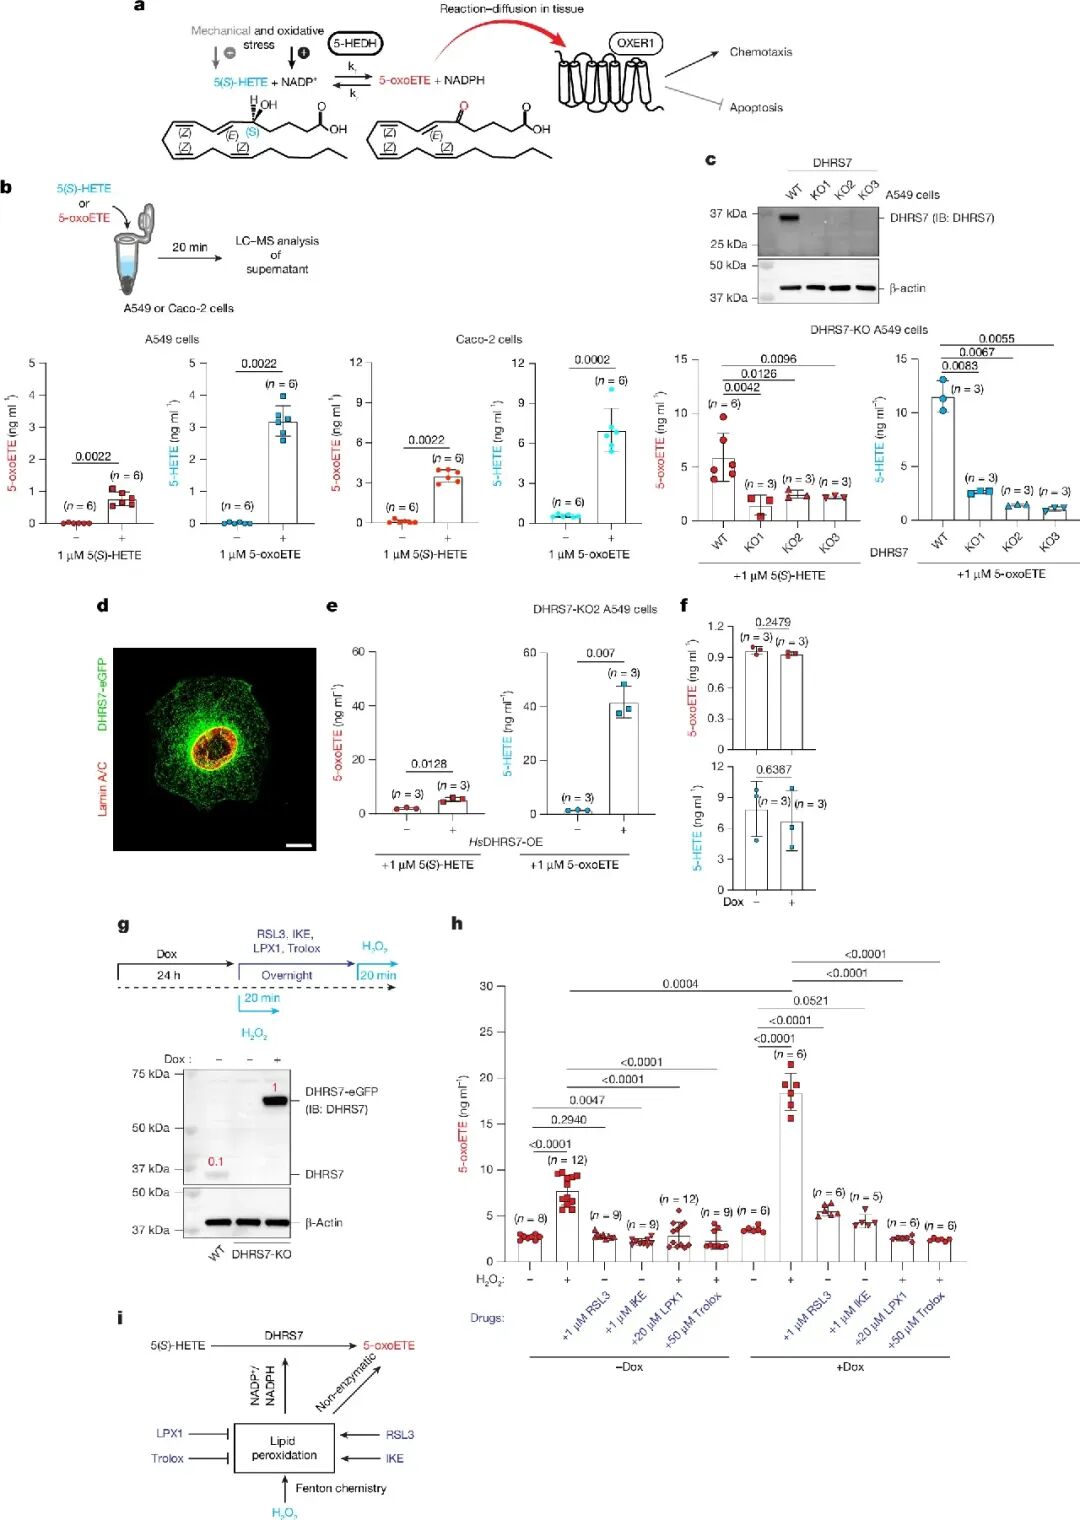
DHRS7 作为 5-HEDH 的鉴定及其在脂质过氧化诱导 5-oxoETE 生成中的作用
两组实验线索相互印证,揭示了本研究最核心的发现:5‑oxoETE‑OXER1 通路拥有双重生理使命,它除了召集免疫细胞赶赴损伤位点,还承担保护上皮细胞,抵御炎症附带损伤的关键作用。当通路被阻断,细胞失去这套保护机制;肠道内共生微生物持续带来低水平氧化压力,肠上皮细胞发生凋亡,细胞死亡之后又进一步诱发继发性肠道炎症。
团队进一步解析下游效应机制,发现NUDIX 水解酶家族蛋白介导细胞保护效应,这类蛋白如同分子“清理维修工”,清除被氧化损伤的核苷酸,避免受损核苷酸积累诱发细胞凋亡。也就是说,5‑oxoETE 不只是预警的警报器,同时也是守护上皮组织的防护盾牌。
从分子调控逻辑来看,DHRS7 本身相当于一个细胞质氧化还原传感器,会根据胞质内NADP⁺/NADPH的比值切换催化方向。在伤口损伤部位,氧化应激水平高,NADP⁺浓度上升,DHRS7 催化生成促炎脂质 5‑oxoETE,经由 OXER1 受体发出信号,快速招募抗菌白细胞。
而在完整未受损的健康组织中,NADP⁺水平偏低,DHRS7 发挥还原酶活性,降解 5‑oxoETE,避免不必要的炎症信号异常激活。这套依靠 NADPH 代谢实现的氧化还原感知模式,跳出了过去经典的半胱氨酸硫醇氧化的信号感知范式,直接把细胞代谢状态和免疫应答信号紧密耦联在一起。
这项研究同时整合了机械应激这一上游调控环节:组织发生损伤时,机械张力会激活胞质磷脂酶 A₂,释放花生四烯酸,而花生四烯酸正是合成 5‑oxoETE 的前体原料,该实验室的前期工作已经解析这一步上游分子事件。完整通路可以把机械损伤信号和氧化代谢应激两种完全不同的外界输入整合,输出一套协调统一的组织保护性应答。
结合人类疾病数据可以看到,胃肠道、子宫内膜肿瘤样本中可以检出DHRS7与OXER1的功能改变突变,OXER1功能缺失突变,和结直肠癌、胰腺癌、子宫内膜癌患者更差的临床预后存在关联。在炎症性肠病患者样本中,肠道黏膜 5‑oxoETE 含量偏低,往往对应更差的疾病结局。过往非人灵长类哮喘相关独立研究也提示,阻断 OXER1 受体,除了抑制免疫细胞浸润气道,还会造成气道保护性黏液分泌细胞丢失。
以上多条证据共同提示,维持这条脂质通路的功能平衡,对于黏膜屏障稳态至关重要。三十多年前那个身份不明的酶,如今帮助科研人员重新理解炎症防御与组织保护之间的精妙权衡,也为炎症性肠病、哮喘、黏膜相关肿瘤开辟了新的靶点方向。
参考文献:
Ma, Y., Lengyel, M., Hui, K.L. et al. 5-oxoETE links redox control of epithelial damage detection and resilience. Nature (2026). doi:10.1038/s41586-026-11121-2
点击下方“药渡”,关注更多精彩内容
免责声明
微信公众号的推送规则又双叒叕改啦,如果您不点个“在看”或者没设为"星标",我们可能就消散在茫茫文海之中~点这里,千万不要错过药渡的最新消息哦!👇👇👇