Science | RFdiffusion3: 生物聚合物中原子级功能位点的支架设计
摘要
生物分子的催化、识别及其他复杂功能,本质上取决于多个原子在三维空间中的精确排列。然而,现有生成式蛋白质设计方法主要采用氨基酸残基级表示,难以直接控制催化残基、配体及核酸之间复杂的原子相互作用,从而限制
正文
生物分子的催化、识别及其他复杂功能,本质上取决于多个原子在三维空间中的精确排列。然而,现有生成式蛋白质设计方法主要采用氨基酸残基级表示,难以直接控制催化残基、配体及核酸之间复杂的原子相互作用,从而限制了人工酶与功能性生物聚合物的设计能力。
研究人员提出了RFdiffusion3(RFD3),一种基于全原子自由扩散的生成式人工智能模型,能够在统一框架下设计蛋白质、RNA、DNA及其复合物,并通过原子级几何约束构建复杂功能位点。与此前的RFdiffusion2相比,RFD3不再依赖残基级扩散,而是直接生成主链和侧链原子坐标,从而更加灵活地控制催化基团、氢键、配体相互作用及原子埋藏程度。
计算基准显示,RFD3在41项原子级酶活性位点支架设计任务中的37项优于RFdiffusion2,并在RNA结构设计和功能性分子识别方面表现出更高的结构准确性与设计多样性。实验研究进一步证明,RFD3能够从头设计具有复杂双金属催化中心的磷酸三酯酶,以及选择性切割与淀粉样变性疾病相关的甲状腺素转运蛋白(TTR)的锌金属蛋白酶。两类设计均通过无需前期实验优化的初始96个候选筛选获得活性催化剂。该研究为跨生物聚合物类型的原子级功能设计提供了新的统一计算框架。
近年来,生成式深度学习显著推动了从头蛋白质设计的发展。RFdiffusion、BindCraft等方法已经能够生成具有特定折叠结构、组装方式和蛋白质结合能力的人工蛋白。然而,这些方法主要以氨基酸残基作为基本表示单元,虽然适合蛋白质骨架和结合界面设计,却难以精确描述催化反应所需的复杂原子几何关系。
对于人工酶设计而言,功能通常依赖多个催化残基侧链原子、底物及辅因子之间的协同作用。即使蛋白质整体骨架与设计结构高度一致,催化基团的微小位移、侧链旋转异构体的变化或氢键网络的偏差,也可能导致酶活性显著下降。
RFdiffusion2通过引入催化残基关键原子的几何约束,改善了酶活性位点支架设计能力。然而,该方法的主体扩散过程仍然在残基级进行,难以同时生成大量额外的侧链–配体相互作用,也不便于直接控制原子级氢键和溶剂可及性。
另一方面,RNA和DNA同样依赖精确的三维原子排列实现分子识别与催化功能,但现有核酸生成模型通常采用核苷酸级表示,难以统一处理蛋白质、核酸和小分子之间的复杂相互作用。
研究人员因此提出,若将所有生物聚合物的原子作为统一建模对象,并直接根据特定功能位点的几何条件生成周围结构,便有望突破残基级表示的限制,实现跨蛋白质与核酸体系的通用功能设计。
方法
研究人员开发了基于Transformer U-Net架构的全原子扩散模型RFD3,以统一表示蛋白质、RNA和DNA中的原子及其相互作用。对于蛋白质,每个氨基酸残基统一采用4个主链原子和10个侧链原子的表示方式,对原子数量不足的残基引入虚拟原子填充;对于核酸,则根据RNA和DNA的糖–磷酸骨架及碱基原子构建统一表示,最多包含23个原子。模型通过原子级与残基级双分辨率特征交互、稀疏注意力及交叉注意力池化,在生成过程中直接预测原子坐标,并利用精简的条件编码模块、扩散步内循环计算和无分类器引导提高生成效率与约束满足能力。训练数据整合截至2024年12月的PDB结构、AlphaFold2预测结构及核酸预测结构,覆盖蛋白质、小分子、RNA、DNA及其相互作用体系。模型采用分阶段训练,并针对RNA任务进行专门微调。计算评估包括蛋白质结合设计、小分子结合设计、RNA结构生成、RNA适配体设计及原子级酶活性位点支架构建。对于实验验证,研究人员利用RFD3生成复杂催化中心周围的蛋白质骨架,再通过LigandMPNN设计序列,并结合AlphaFold3、Chai-1结构预测及蛋白质表达、纯化、动力学和质谱实验,验证人工磷酸三酯酶与TTR靶向金属蛋白酶的催化活性。
结果
RFdiffusion3建立统一的全原子生物聚合物生成框架
研究人员首先构建了能够直接对蛋白质、RNA和DNA原子坐标进行扩散生成的统一模型。与此前使用残基框架作为基本生成单元的方法不同,RFD3在整个扩散过程中同时处理主链与侧链原子,从而能够直接表达复杂的局部几何约束。
为了处理不同氨基酸和核苷酸原子数量不一致的问题,研究人员采用固定大小的原子表示,并通过虚拟原子填充较小的侧链和碱基。该设计使未知序列条件下的结构生成能够在统一的数据结构中进行,同时保留不同残基的化学差异。
模型采用原子级与残基级特征交互的Transformer U-Net架构,通过稀疏注意力聚焦空间邻近原子,并利用交叉注意力在细粒度原子表示与粗粒度序列表示之间传递信息。与AlphaFold3使用的大型条件编码网络不同,RFD3将Pairformer从48层压缩至2层,并移除计算成本较高的三角注意力和三角乘法更新,使最终模型仅包含约1.68亿个可训练参数。
在功能设计方面,RFD3支持直接指定催化原子坐标、氢键供受体状态、配体原子埋藏程度以及功能基团与蛋白质整体结构之间的空间关系,而无需预先指定催化残基在生成序列中的位置。
在蛋白质结合设计基准中,RFD3在五个测试靶标上均优于RFdiffusion1,并在其中三个靶标上优于BoltzGen。同时,RFD3生成的结构具有更高多样性,对于典型长度蛋白质,其生成速度超过对比方法的两倍。
在小分子结合设计任务中,RFD3在四个测试体系中的三个取得更高的计算预测成功率,并能够利用原子级溶剂可及性条件控制小分子相对于蛋白质的位置和朝向。
这些结果表明,全原子表示不仅增强了功能条件的表达能力,还能够通过轻量化网络设计保持较高的生成效率。
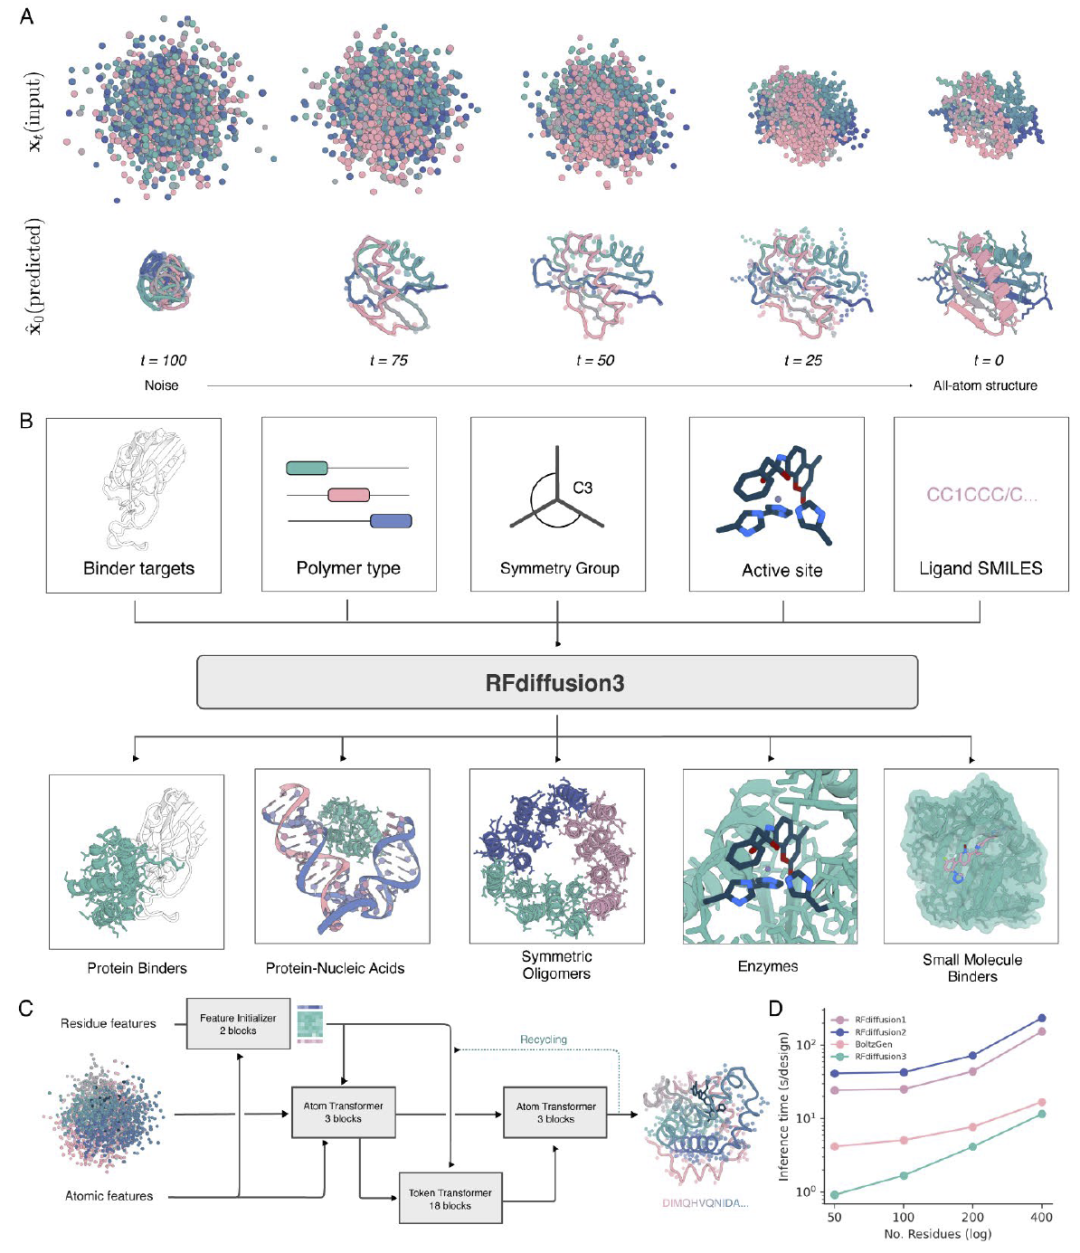
图1|RFdiffusion3统一全原子扩散模型的架构、功能位点条件控制及计算性能比较。
RFdiffusion3提高RNA结构生成与小分子适配体设计能力
在验证蛋白质生成能力后,研究人员进一步考察RFD3能否将原子级生成策略扩展至核酸体系。研究首先使用Eterna OpenKnot基准中的57个RNA结构设计任务,评估模型对复杂二级结构及三维构象的联合设计能力,并与此前基于RFdiffusion-AllAtom开发的RFDpoly进行比较。
结果显示,在以LDDT大于0.9作为高质量结构恢复标准时,RFD3成功完成21个任务,而RFDpoly仅完成10个。在以RMSD小于4 Å作为评价标准时,RFD3与RFDpoly分别完成9个和5个任务,说明RFD3能够更准确地同时设计RNA序列及其三维结构。
研究人员还展示了包含二阶和三阶假结结构的RNA设计案例。AlphaFold3预测结构与RFD3设计模型高度一致,表明模型能够处理具有复杂长程碱基配对关系的RNA折叠。进一步分析发现,RFD3不仅能够恢复常规碱基配对,还能生成更加准确的非经典碱基相互作用。对于部分糖边缘–经典边缘配对类型,RFD3设计的相互作用能够以约50%的比例被AlphaFold3重新预测,而RFDpoly在相应类型上的恢复能力明显不足。
随后,研究人员将RFD3应用于腺苷单磷酸(AMP)和黄素单核苷酸(FMN)结合RNA适配体的设计。针对每种小分子生成1,200个长度约40–50个核苷酸的RNA候选,并使用配体埋藏与氢键条件控制结合口袋形成。
在计算评估中,以配体RMSD小于4 Å作为成功标准时,设计成功率约为1%;放宽至8 Å后,成功率提高至约25%。代表性AMP适配体形成三个茎区,将配体容纳于中央未配对区域,并通过碱基堆积和多个预测氢键稳定结合构象。这些结果证明,RFD3能够在统一原子生成框架下设计复杂RNA结构及其小分子结合口袋,为RNA适配体和核酶设计提供新的计算方法。不过,这些RNA结合结果主要来自计算预测,尚不等同于实验验证的结合活性。
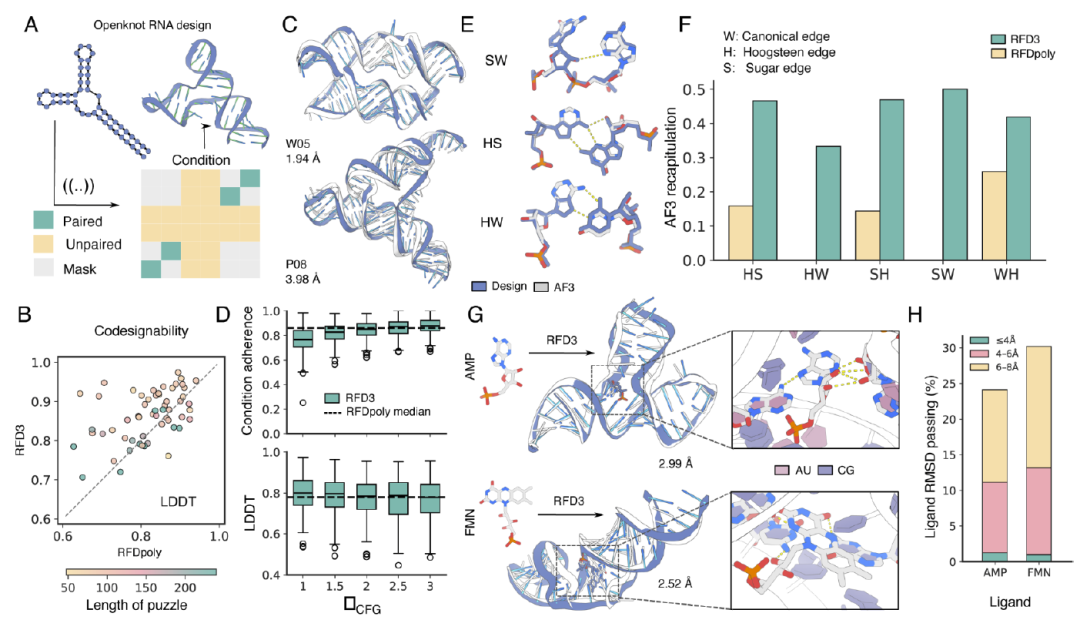
图2|RFdiffusion3在RNA三维结构、非经典碱基配对及小分子适配体设计中的性能。
原子级功能位点支架构建显著提高复杂人工酶设计精度
人工酶从头设计要求在未知蛋白质骨架和序列条件下,精确构建多个催化残基之间的空间关系。研究人员因此重点评估RFD3对复杂原子级催化基序的支架构建能力。与RFdiffusion2需要通过残基框架匹配催化原子不同,RFD3直接将给定催化原子作为条件输入,在扩散过程中同时生成催化残基其余原子及周围蛋白质结构,从而减少对残基位置和侧链构象的预先假设。
研究人员利用Mechanism and Catalytic Site Atlas中的41项原子级酶活性位点支架设计任务开展比较。结果显示,RFD3在37项任务中优于RFdiffusion2,占总任务数的90%,尤其在需要同时满足多个独立催化残基几何约束的困难任务中表现更加突出。
进一步选取醛缩酶、鸟氨酸脱羧酶、糖苷酶和磷酸三酯酶四类均包含六个催化残基的体系,研究发现RFD3在所有四项任务中均能够生成更多活性位点经结构重新预测后偏差小于1.25 Å的候选结构,并表现出更合理的催化侧链旋转异构体分布。
在糖苷酶设计案例中,RFD3能够更加精确地将催化谷氨酸及其他关键残基排列在糖类底物周围,显示出全原子扩散对复杂局部几何关系的建模优势。
研究人员还将该策略扩展至具有C2对称性的多亚基人工酶设计。在15个天然具有C2对称性的测试体系中,RFD3能够生成同时满足对称性和催化原子几何要求的蛋白质复合物,其中部分体系每个亚基包含多达七个催化残基。
此外,研究人员以RNase P为例,展示了由蛋白质侧链和RNA碱基共同参与催化的混合活性位点设计。RFD3能够在同一生成框架中同时构建蛋白质和RNA结构,并恢复两类生物聚合物对催化中心的共同贡献。这些结果说明,RFD3的原子级功能设计能力不再局限于单链蛋白质,而能够扩展至对称酶复合物及蛋白质–核酸混合催化体系。
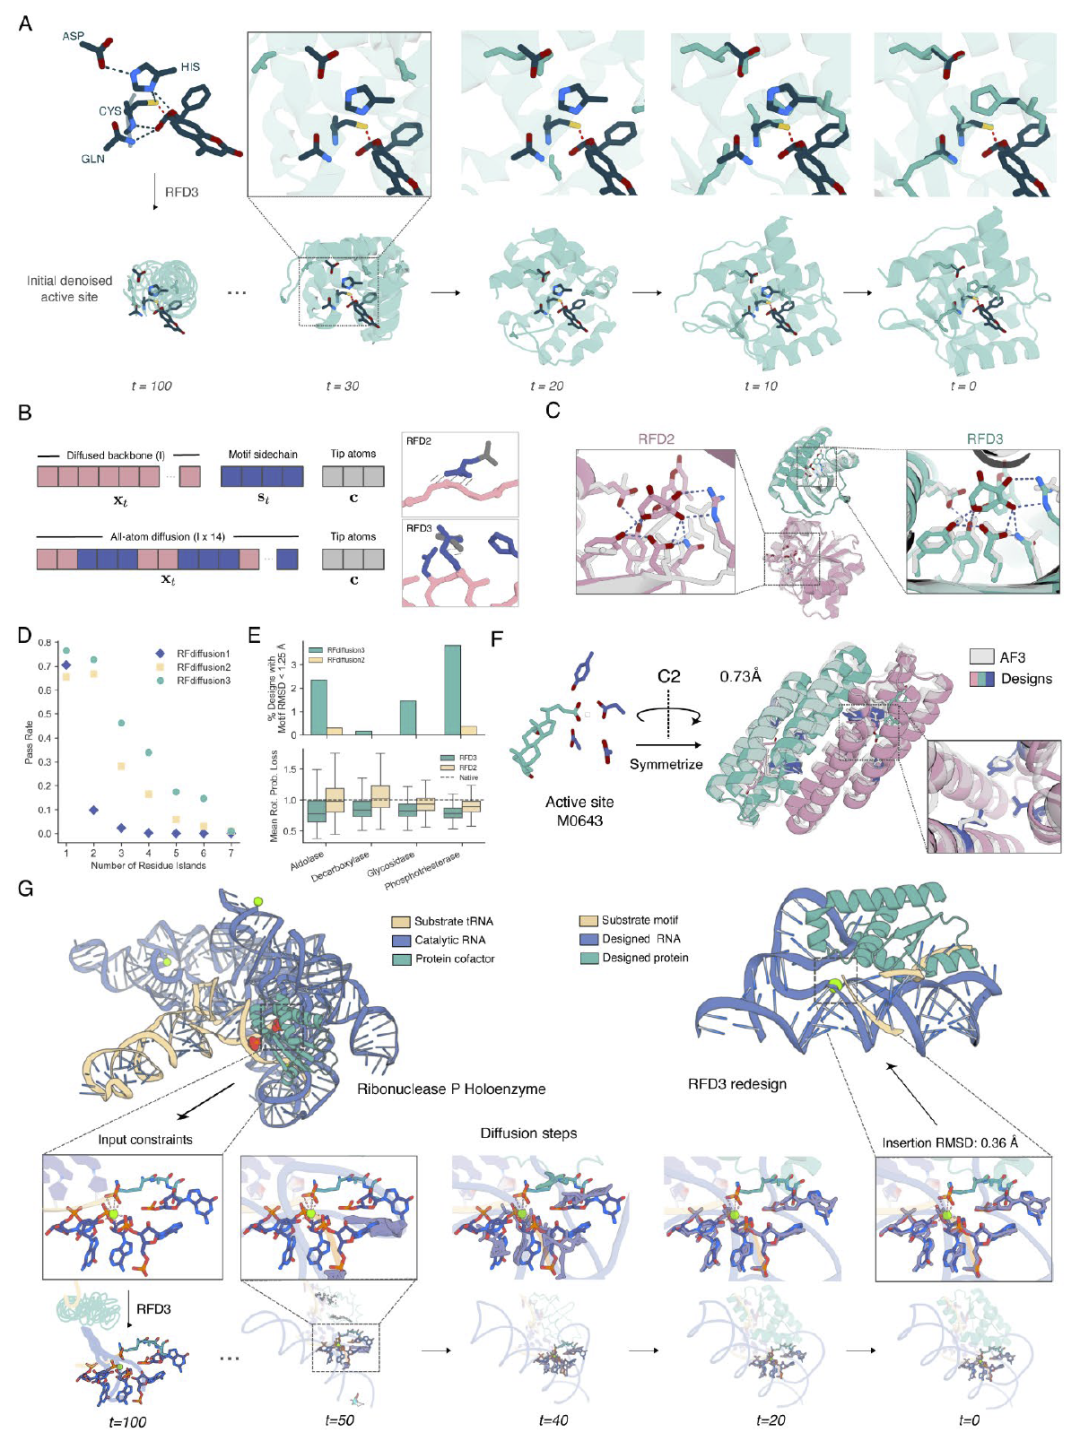
图3|RFdiffusion3在复杂酶催化位点、对称蛋白质复合物及蛋白质–RNA混合催化结构设计中的表现。
从头设计复杂双金属磷酸三酯酶并获得实验催化活性
为了验证RFD3能否真正构建具有复杂催化功能的人工酶,研究人员首先选择有机磷化合物水解作为实验案例。天然磷酸三酯酶通常具有包含六个催化残基的双金属活性中心,其中一个经过翻译后氨甲酰化修饰的赖氨酸负责桥接两个金属离子。由于这一催化中心涉及多个分离的功能基团、金属辅因子和底物相互作用,其结构复杂程度明显高于传统人工酶设计任务。
研究人员以对氧磷(paraoxon)为模型底物,通过量子化学计算构建反应过渡态,并枚举不同金属配位方式及催化残基构象,再利用RFD3生成能够容纳这些催化条件的蛋白质骨架。在第一轮无需实验优化的设计中,研究人员表达并测试了96个人工蛋白,发现其中4个具有磷酸三酯水解活性。这些活性设计来自同一个基础生成骨架。
最优设计被命名为ZAPP-1,其催化周转数达到0.015 s⁻¹,催化效率约为2.0 M⁻¹ s⁻¹。结构分析显示,该蛋白主要由α螺旋组成,其计算模型与AlphaFold3预测的金属–底物复合物高度一致,Cα RMSD仅为0.53 Å。
研究人员进一步发现,补充碳酸氢盐能够显著提高催化活性;去除补充后,催化周转数下降约11倍。质谱分析支持活性位点赖氨酸发生氨甲酰化,而对六个关键催化残基分别进行突变均导致活性显著降低或消失,证明催化功能依赖于预先设计的活性中心。为验证设计流程的可重复性,研究人员进一步开展第二轮192个候选蛋白的筛选,获得来自四种不同骨架的活性设计。其中ZAPP-2的催化周转数达到0.023 s⁻¹,催化效率约为4 M⁻¹ s⁻¹,相较于非催化反应实现约5×10⁵倍的速率提升。
这些结果证明,RFD3能够从头构建具有多金属配位、翻译后修饰及复杂底物识别要求的人工催化中心,而不再局限于相对简单的单一催化反应。
从头设计选择性切割TTR的金属蛋白酶
研究人员进一步考察RFD3是否能够设计作用于生物学相关大分子底物的人工酶,并选择与系统性淀粉样变性疾病有关的甲状腺素转运蛋白TTR作为研究目标。研究人员将TTR淀粉样纤维核心中的PAINVAVHVF序列作为切割靶标,结合天然氨肽酶N的锌催化中心及astacin的底物结合几何关系,构建理想化金属蛋白酶活性位点。随后利用RFD3同时生成催化残基排列、底物结合构象和周围蛋白质骨架。
在96个初始设计中,有56个在37 °C反应18小时后表现出超过10%的顺式底物切割活性,成功率约为58%。研究人员进一步通过反式荧光共振能量转移实验筛选获得TTRg4、TTRg10和TTRg11等活性较高的设计。
其中,TTRg11能够在1小时内切割大部分对应底物,且质谱验证显示切割发生在预先指定的位置。与六种其他淀粉样变性相关蛋白来源的多肽相比,TTRg11对TTR目标序列表现出明显更高的催化活性,说明模型能够在复杂催化结构设计中实现一定程度的底物选择性。动力学分析显示,未经后续实验优化的TTRg11催化周转数达到0.072 s⁻¹,米氏常数约为70 μM,催化效率达到1,100 M⁻¹ s⁻¹,其活性已进入部分天然蛋白酶的催化参数范围。
值得注意的是,与此前需要同时设计人工底物序列的方案不同,RFD3能够直接针对预先确定的天然蛋白来源序列构建蛋白酶,从而显著提高其面向特定生物学靶标的设计能力。
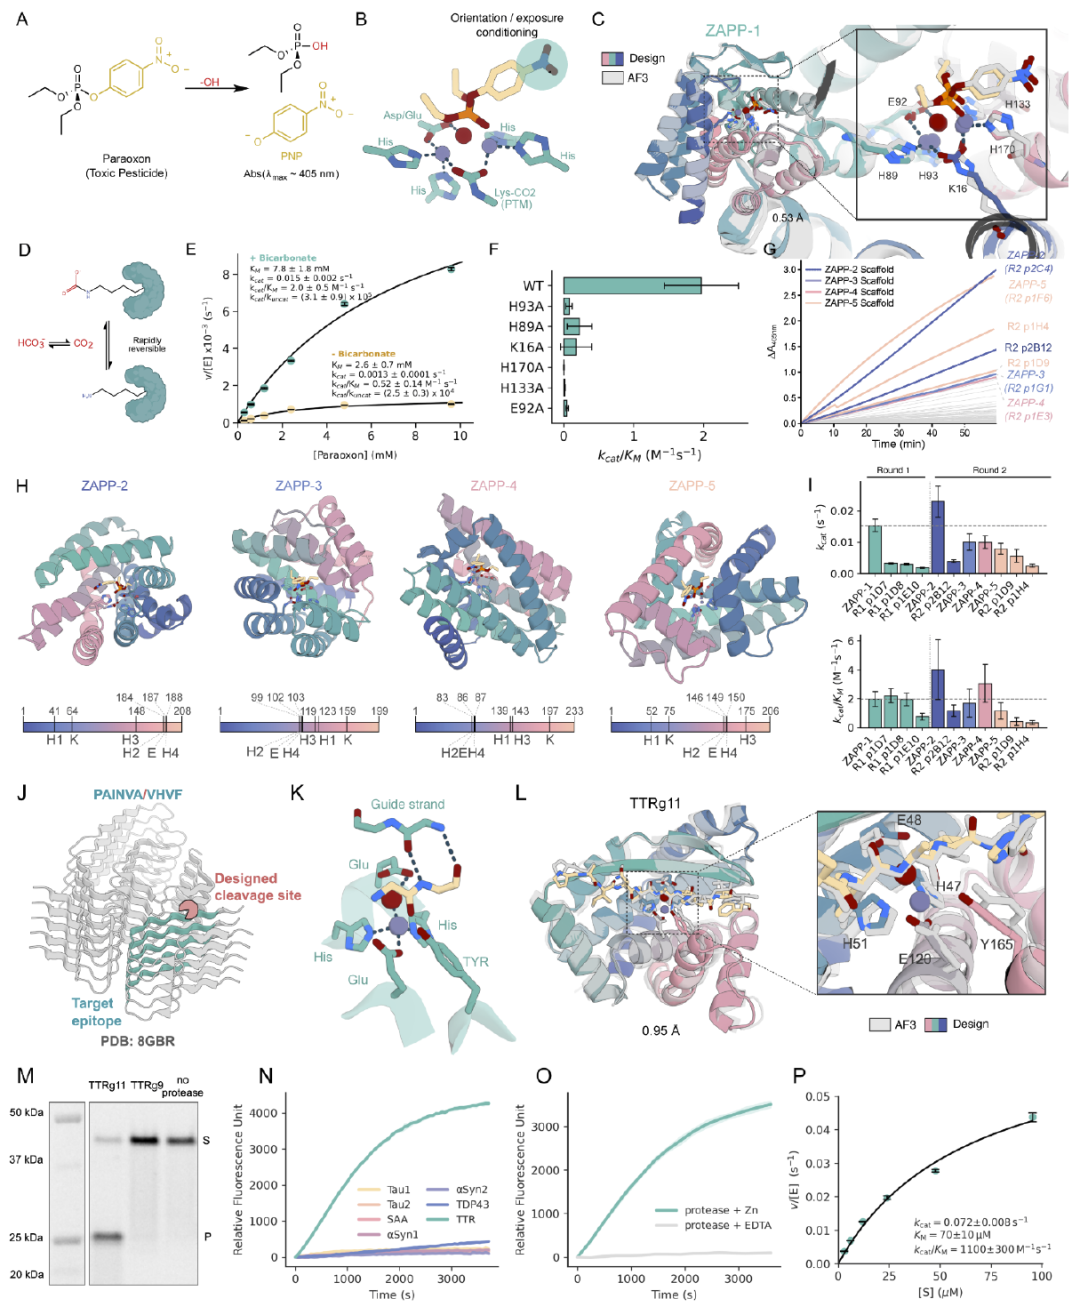
图4|RFdiffusion3从头设计双金属磷酸三酯酶及靶向TTR的金属蛋白酶的实验验证。
讨论
本研究提出的RFdiffusion3将生成式生物分子设计从残基级进一步推进至统一的全原子表示,使复杂功能位点能够直接通过原子坐标、氢键、配体相互作用和溶剂可及性等条件进行控制。相比此前主要关注蛋白质整体结构和少量催化原子的设计方法,RFD3能够同时生成催化侧链、结合口袋及其周围的完整原子结构,为更复杂的功能设计提供了新的基础。
研究的重要贡献在于证明,全原子表示不仅提高了催化位点的几何恢复精度,还能够统一处理蛋白质、RNA、DNA及其混合体系。特别是在复杂多金属催化中心与天然疾病相关多肽切割任务中,RFD3通过无需实验优化的初始候选筛选获得具有明确催化活性的人工酶,展示了从计算功能位点设计到实验功能实现的可行性。
不过,当前模型仍存在一定局限。尽管RFD3能够准确生成符合几何条件的活性位点,但静态原子排列并不能完全描述反应能垒、催化过程中构象变化及真实生理环境中的动力学行为。部分人工酶的催化效率仍低于高活性的天然酶。此外,RNA适配体设计及部分混合催化体系的结果仍主要停留在计算验证阶段,需要进一步通过实验确认其真实功能。
总体而言,RFdiffusion3建立了面向蛋白质与核酸的统一原子级生成框架,将功能性生物分子的计算设计从整体结构控制推进至复杂催化原子排列与生物学功能实现,为下一代人工酶、RNA适配体和多组分生物分子系统设计提供了重要技术基础。
编译整理:王建民
参考资料
Jasper Butcher et al. ,Atomic functional site scaffolding in biopolymers with RFdiffusion3.Science0,eaeh2982
DOI:10.1126/science.aeh2982