Nature | Baker团队实现半胱氨酸蛋白酶的从头设计
摘要
DRUGONE从头设计具有特定催化功能的人工酶是计算蛋白质设计的重要目标。然而,现有研究主要集中于反应能垒较低、底物相对简单的模型反应,对于天然蛋白质中高度稳定的肽键水解,仍然难以实现有效催化。在中性
正文
DRUGONE
从头设计具有特定催化功能的人工酶是计算蛋白质设计的重要目标。然而,现有研究主要集中于反应能垒较低、底物相对简单的模型反应,对于天然蛋白质中高度稳定的肽键水解,仍然难以实现有效催化。在中性水溶液中,肽键的自发水解半衰期可达数百年,因此,构建能够活化亲核基团、稳定反应中间体并准确识别底物的人工蛋白酶具有很大挑战。
研究人员利用RFdiffusion2-MI生成模型,从头设计以半胱氨酸为亲核中心、依赖Cys–His–Asp催化三联体的人工蛋白酶。在69个实验测试设计中,13个能够准确切割预定肽键,设计成功率达到19%。初始设计相较于非催化肽键水解实现了最高约3×10⁷倍的反应加速,进一步通过局部序列优化,将催化加速倍数提高至约1.8×10⁹倍。
结构分析表明,设计蛋白酶采用了不同于天然蛋白酶的折叠方式,六个晶体结构与计算模型的Cα均方根偏差均小于1.2 Å。进一步的实验和模拟发现,催化效率与天然蛋白酶之间的差距主要来自活性位点预组织不足和底物定位不够精确。此外,设计蛋白酶能够在哺乳动物细胞内切割目标序列,为可编程蛋白质切割工具及合成生物学应用提供了新的可能。
蛋白酶广泛参与蛋白质成熟、细胞信号调控、物质代谢和蛋白质降解等生物学过程,也是生物技术与医学研究中常用的工具。天然蛋白酶经过长期进化,形成了能够识别特定底物并高效切割肽键的催化结构。然而,在完全不依赖天然蛋白酶骨架的情况下,从头设计具有类似功能的人工酶仍然十分困难。
这一挑战首先来自肽键本身的化学稳定性。与容易发生水解的活化酯键不同,蛋白质主链中的酰胺键受到共振稳定作用保护,在生理条件下几乎不会自发断裂。因此,蛋白酶必须通过精确的催化基团排列降低反应能垒,同时利用底物结合口袋将目标肽键固定在适当位置。
天然半胱氨酸蛋白酶通常利用Cys–His–Asp催化三联体完成这一过程。组氨酸通过质子转移促进半胱氨酸形成具有较强亲核活性的硫负离子,天冬氨酸调节组氨酸的质子化状态,而氧阴离子穴则通过氢键稳定反应过程中形成的高能中间体。与此同时,底物结合沟槽需要提供足够的结合能和序列选择性,确保正确的肽键进入催化中心。
近年来,RFdiffusion等生成式蛋白质设计方法能够根据局部功能基序生成全新的蛋白质骨架。RFdiffusion2进一步支持根据催化原子的空间位置构建结构,而无需提前确定催化残基的序列位置。但是,蛋白酶设计不仅需要准确放置催化残基,还需要形成能够识别柔性多肽底物的复杂界面。
研究人员因此采用面向分子界面设计的RFdiffusion2-MI,希望将催化中心生成与底物识别结合起来,直接构建具有肽键水解能力的全新半胱氨酸蛋白酶。
方法
研究人员首先参考酵母天然半胱氨酸蛋白酶Ulp1的晶体结构,提取由半胱氨酸、组氨酸和天冬氨酸组成的催化三联体,以及由主链氢键供体和谷氨酰胺侧链构成的氧阴离子穴,并将四个底物主链残基的几何信息纳入理想化催化基序。随后利用RFdiffusion2-MI,在满足催化基序约束的同时生成蛋白质骨架和多肽结合沟槽,重点探索通过平行、反平行及夹层式β链配对稳定底物构象的设计。对于生成结构,研究人员使用ProteinMPNN同时优化蛋白酶与底物序列,再通过AlphaFold3评估游离酶及酶–底物复合物的结构一致性、活性位点几何和折叠稳定性。经过计算筛选,选择69个设计进行实验表达,并通过蛋白酶–底物融合体系检测顺式切割活性,利用荧光共振能量转移实验、液相色谱–质谱和稳态动力学测定验证反式催化能力。进一步通过催化残基突变、X射线晶体学、圆二色谱、局部饱和突变、PLACER构象采样及分子动力学模拟分析催化机制和活性限制因素,最终利用HeLa细胞中的核定位荧光报告系统验证设计蛋白酶的细胞内切割能力。
结果
从头设计具有催化三联体与底物结合沟槽的半胱氨酸蛋白酶
研究人员首先构建了能够同时满足肽键水解催化条件与底物结合要求的计算设计流程。为了降低复杂催化中心设计的难度,研究选择天然Ulp1蛋白酶中的关键催化残基作为几何参考,并保留能够稳定氧阴离子中间体的主链及侧链氢键。
与直接改造天然蛋白酶不同,研究人员仅固定必要的催化原子和局部底物几何关系,随后利用RFdiffusion2-MI生成其余蛋白质骨架,使模型能够探索天然蛋白质结构之外的折叠空间。生成过程中,多肽底物的序列和构象也被允许自由变化,以寻找同时兼容催化中心和结合界面的结构。
研究发现,生成模型能够产生多种不同的底物结合模式,包括平行β链、反平行β链及夹层式β链配对。这些结构通过主链氢键将多肽稳定在结合沟槽内,使待切割肽键能够靠近催化半胱氨酸。
经过结构筛选与序列优化,研究人员获得了多个具有合理催化几何构型的候选蛋白。为快速验证其功能,研究将对应底物连接至蛋白酶C端,再融合mScarlet荧光蛋白,通过检测蛋白水解后释放的片段判断是否发生切割。
在69个实验测试设计中,共有13个表现出明确的切割活性,成功率达到19%,这些活性设计来自12种测试骨架中的3种。研究人员分别将代表性活性蛋白酶命名为Gawi、Kal和Dokki。其中,Dokki和Kal能够实现接近完全的底物切割,Gawi的切割比例约为95%。质谱进一步确认,13个活性设计均在预期位置切断肽键。
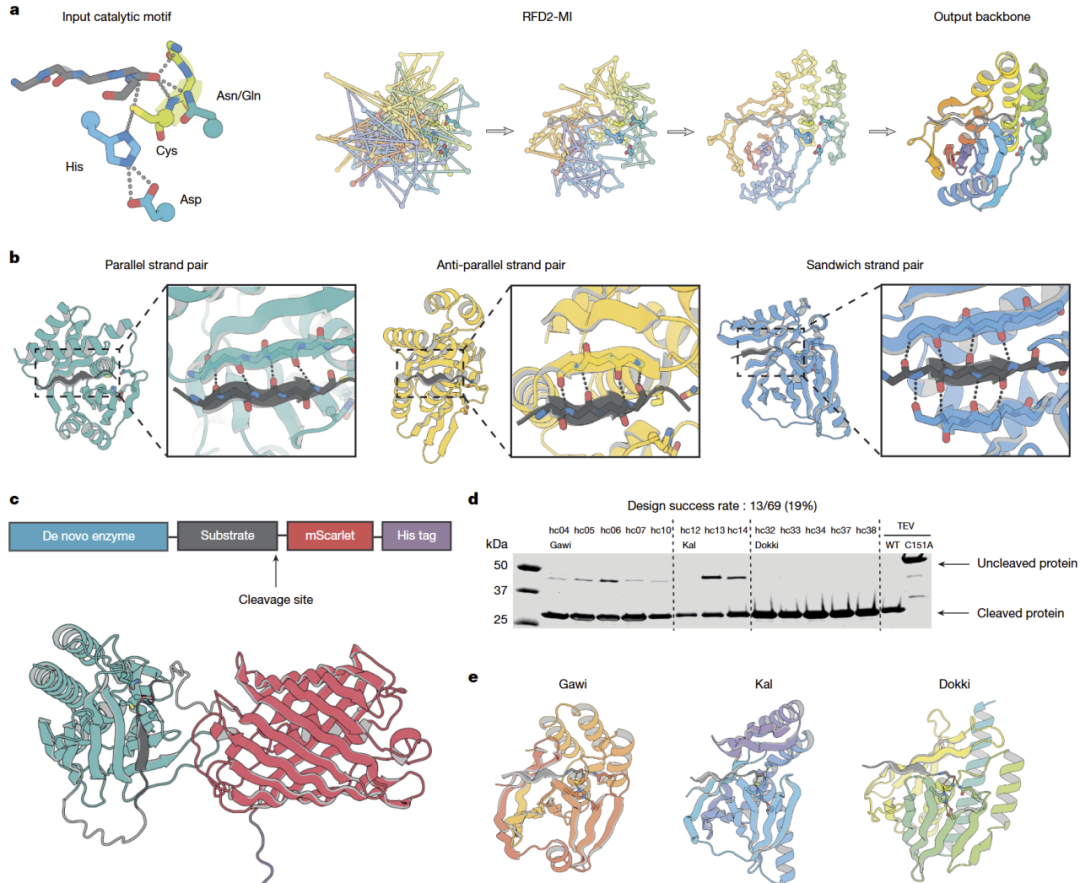
图1|基于RFdiffusion2-MI的半胱氨酸蛋白酶计算设计及初步实验筛选。
人工半胱氨酸蛋白酶具有可验证的催化活性和底物选择性
获得初始活性设计后,研究人员进一步考察其催化机制和反式切割能力。通过将催化半胱氨酸、组氨酸及氧阴离子穴相关残基分别替换为丙氨酸,研究发现,破坏半胱氨酸或组氨酸会使催化活性消失,说明人工蛋白酶确实依赖设计的亲核催化机制。相比之下,破坏氧阴离子穴侧链并不总会完全消除活性,提示局部水分子可能提供一定的补偿作用。
随后,研究人员采用荧光标记的八肽底物检测独立表达的蛋白酶。结果显示,Gawi系列反式切割活性较低,而Kal系列由于底物溶解性问题难以进行可靠的动力学分析。Dokki系列则表现出明确的催化能力,因此成为进一步优化的主要对象。
通过ProteinMPNN开展序列重新设计,研究人员分别获得Gawi和Dokki的多个变体,其中部分变体活性较原始蛋白提高1.2–31倍。代表性优化设计Gawi-09的催化周转数约为8×10⁻⁶ s⁻¹,而Dokki-15达到1.1×10⁻³ s⁻¹,催化效率约为12 M⁻¹ s⁻¹。
研究进一步发现,Dokki-15在pH约7.0时活性最高,其pH依赖性与天然半胱氨酸蛋白酶中催化基团的质子化状态变化相符。圆二色谱实验显示,该蛋白具有较高的热稳定性,熔解温度超过80 °C,并能够在约70 °C条件下保留催化活性。在底物选择性实验中,Dokki-15优先切割其设计底物VPTLTGG/G,而对另外七种具有相似疏水特征的多肽几乎不表现出明显切割。这说明设计蛋白酶的识别能力并非仅来自简单的疏水相互作用,而具有一定的序列特异性。
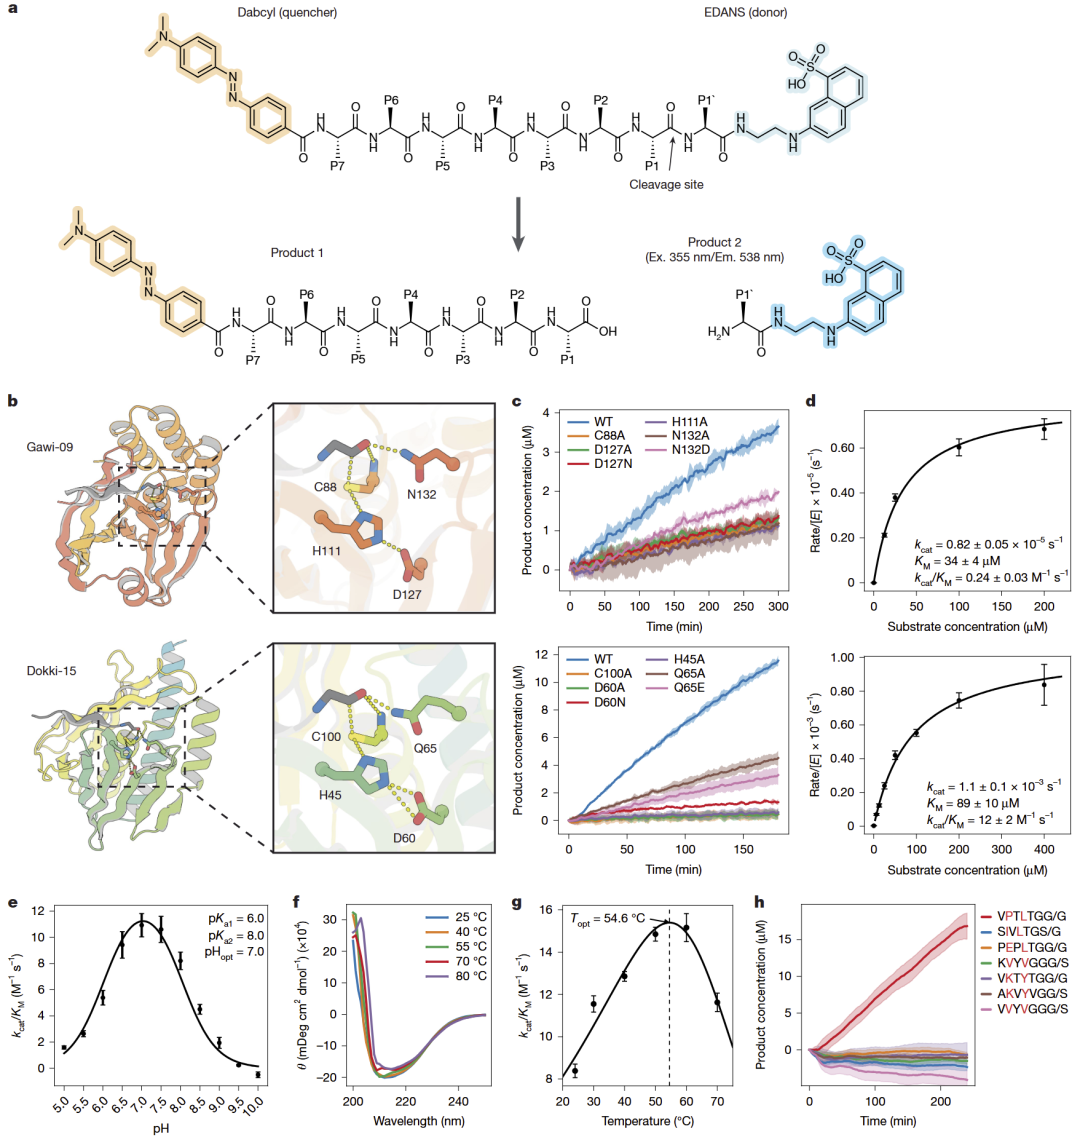
图2|人工半胱氨酸蛋白酶的催化机制、动力学性质、热稳定性及底物选择性。
晶体结构证实人工蛋白酶具有全新的折叠方式与准确的活性位点
为了检验生成模型的结构设计精度,研究人员解析了覆盖三种不同骨架的六个X射线晶体结构,包括Gawi、Kal和Dokki系列的游离状态及底物结合状态。结果显示,所有解析结构均与计算设计模型高度吻合,Cα均方根偏差小于1.2 Å。尤其是在Kal与底物形成的复合物中,催化三联体和底物结合沟槽均保持了预先设计的空间构象,说明生成模型能够准确构建具有催化功能的复杂局部结构。
在Gawi-09的游离结构中,催化残基整体与模型一致,但组氨酸发生一定偏移,可能与晶体生长过程中锌离子的配位有关。而在Dokki系列的游离结构中,研究人员观察到催化半胱氨酸发生氧化,形成与磺酸结构一致的电子密度,并伴随局部组氨酸位置变化。
这些结构变化说明,催化中心虽然能够按照设计形成,但其局部构象仍可能受到氧化状态和环境条件的影响。研究人员还使用Foldseek将人工蛋白酶与已知蛋白质结构进行比较。结果显示,所有设计与天然蛋白质的最高TM-score均低于0.50,表明这些人工蛋白酶并未简单复制天然蛋白酶骨架,而是采用了不同的整体折叠方式。
这一发现说明,天然蛋白酶所依赖的催化化学并不局限于天然进化形成的蛋白质骨架,只要关键催化原子和底物结合关系得到合理组织,全新的蛋白质结构也可能实现相同类型的化学反应。
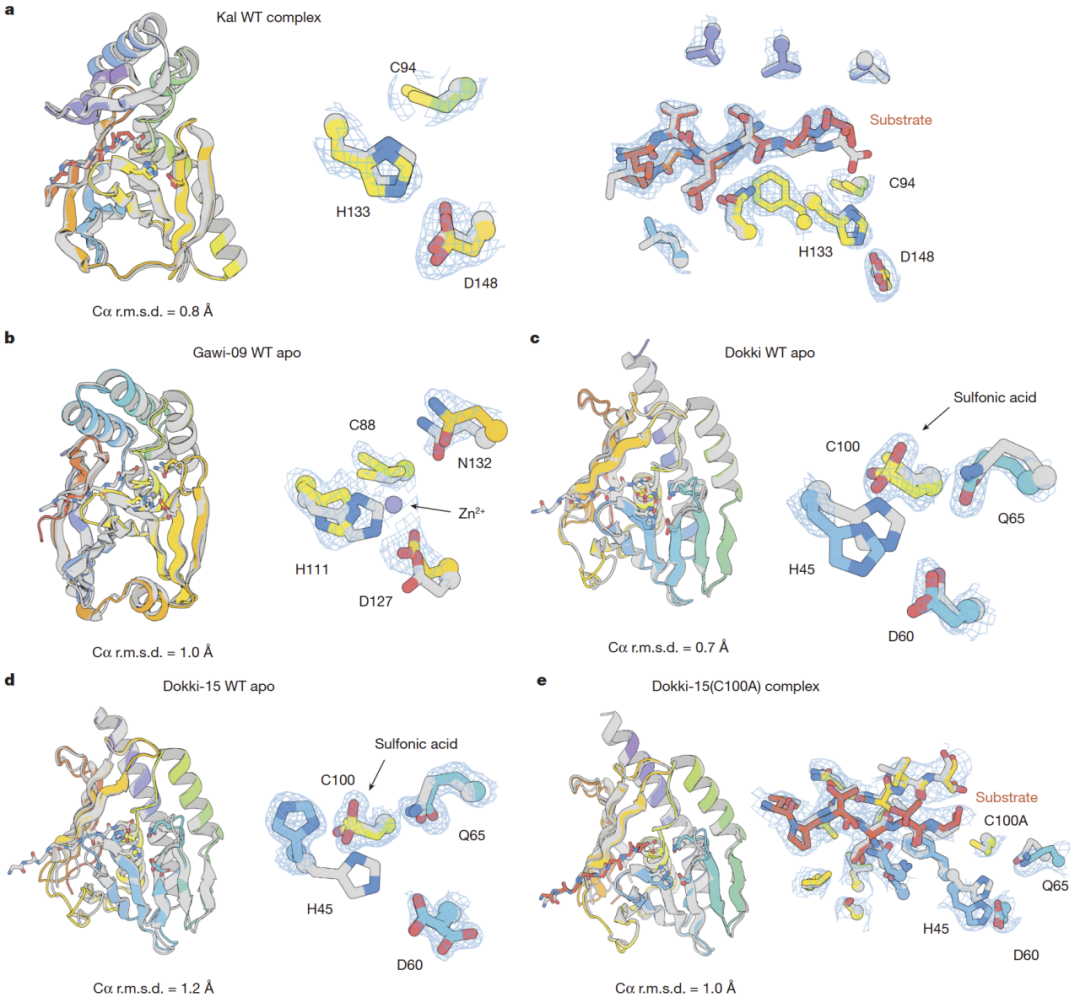
图3|从头设计半胱氨酸蛋白酶的晶体结构解析及与计算设计模型的比较。
优化活性位点预组织使人工蛋白酶催化效率显著提升
尽管初始设计已经具备明确的催化能力,其反应速率仍低于多数天然半胱氨酸蛋白酶。研究人员因此进一步分析影响催化效率的局部结构因素。
首先,研究围绕Dokki-15活性中心的20个氨基酸位置开展系统突变分析,共测试185个单点变体。多数突变会降低催化活性,说明原始设计序列已经具有一定合理性,但在Tyr41、Ser44、Pro67和Thr99等位置仍发现能够改善活性的替换。
通过组合Y41T、S44V、P67V和T99F四个突变,研究人员获得了优化变体Dokki-v2,其催化周转数达到0.064 s⁻¹,催化效率提高至413 M⁻¹ s⁻¹,相比Dokki-15的催化周转数提高约58倍。
与中性条件下非催化肽键水解相比,Dokki-v2实现了约1.8×10⁹倍的反应加速,并能够完成超过130次催化循环。
为了理解活性改善的结构原因,研究人员使用PLACER对催化循环中的不同中间态和过渡态进行构象采样。结果发现,在原始Dokki和Dokki-15中,His45容易形成不利于催化的侧链构象,而优化变体通过Y41T和S44V突变减少了这种非生产性构象。
同时,P67V和T99F通过调整局部氢键网络,改善了氧阴离子穴中Gln65的定位,使催化中心更容易形成适合亲核攻击的几何构型。
不过,优化后的Dokki-v2仍然低于部分天然蛋白酶的催化效率。进一步比较显示,天然蛋白酶通常具有更大的底物结合界面和更丰富的疏水相互作用,能够更准确地固定待切割肽键。
分子动力学模拟也支持这一解释。虽然Dokki-v2较初始设计更容易形成有效催化构象,但底物羰基与催化半胱氨酸之间的空间关系仍不如部分天然酶稳定。
因此,人工蛋白酶的进一步优化不仅需要改善催化残基本身的几何排列,还需要增强底物结合与定位能力。
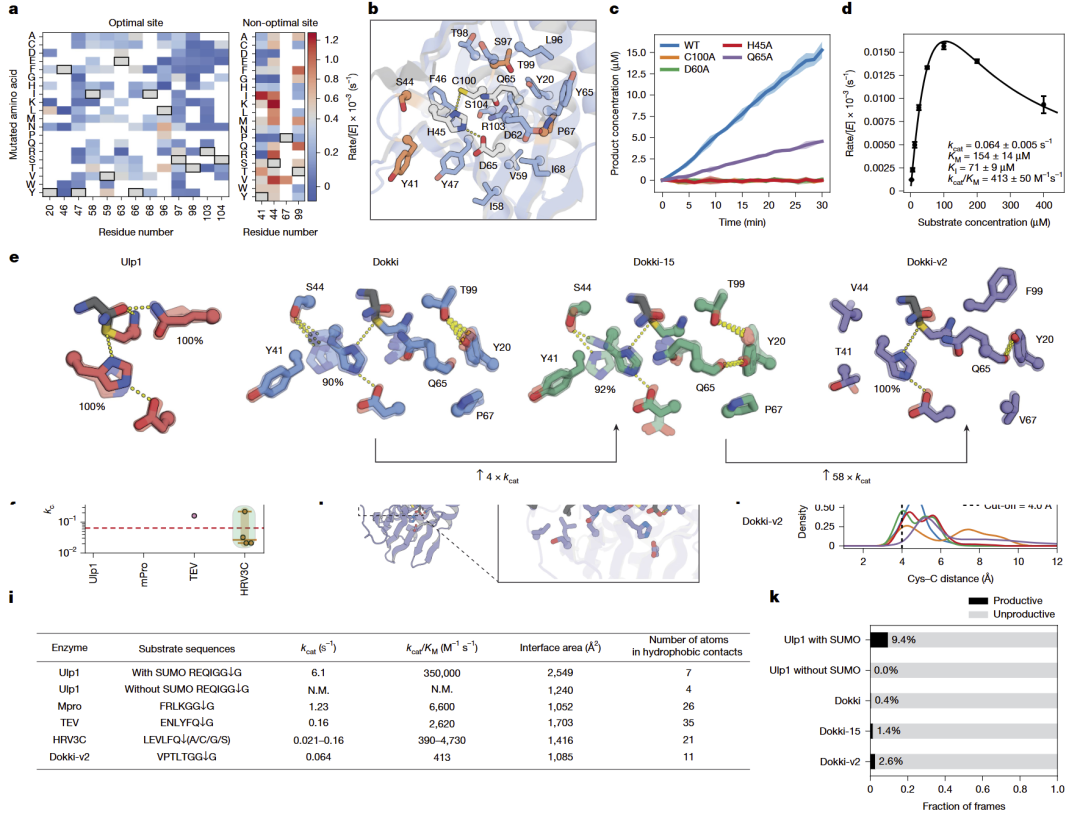
图4|人工半胱氨酸蛋白酶活性位点优化、催化构象预组织及与天然蛋白酶的比较。
从头设计的半胱氨酸蛋白酶能够在哺乳动物细胞内发挥功能
在验证体外催化能力后,研究人员进一步考察人工半胱氨酸蛋白酶是否能够在哺乳动物细胞的复杂环境中正常发挥作用。
研究人员构建了基于核定位荧光报告系统的细胞实验,将sfGFP与mScarlet通过含有人工蛋白酶识别序列的连接肽相连,并利用组蛋白H2B将报告蛋白定位至细胞核。
当人工蛋白酶具有切割活性时,连接肽被水解,mScarlet从核定位报告蛋白中释放,随后在细胞内重新分布。相比之下,如果蛋白酶不具有催化活性,两种荧光信号则持续保持核内共定位。研究人员将Dokki、Dokki-15及Dokki-v2分别导入HeLa细胞,并以催化半胱氨酸突变为丙氨酸的失活蛋白作为对照。
荧光显微镜观察显示,表达活性人工蛋白酶的细胞均出现明显的mScarlet信号重新分布,而表达催化失活变体的细胞仍保持sfGFP与mScarlet在细胞核内共定位。值得注意的是,未经实验优化的原始Dokki设计也能够在细胞内产生可检测的切割效果,说明从头生成的人工蛋白酶能够在真实细胞环境中折叠并保持催化功能,而不必依赖天然蛋白酶骨架。
这些结果证明,计算设计的半胱氨酸蛋白酶不仅能够在纯化蛋白实验中发挥作用,还可以作为细胞内特异性蛋白切割工具,为可编程细胞信号调控和合成生物学系统提供新的组成模块。
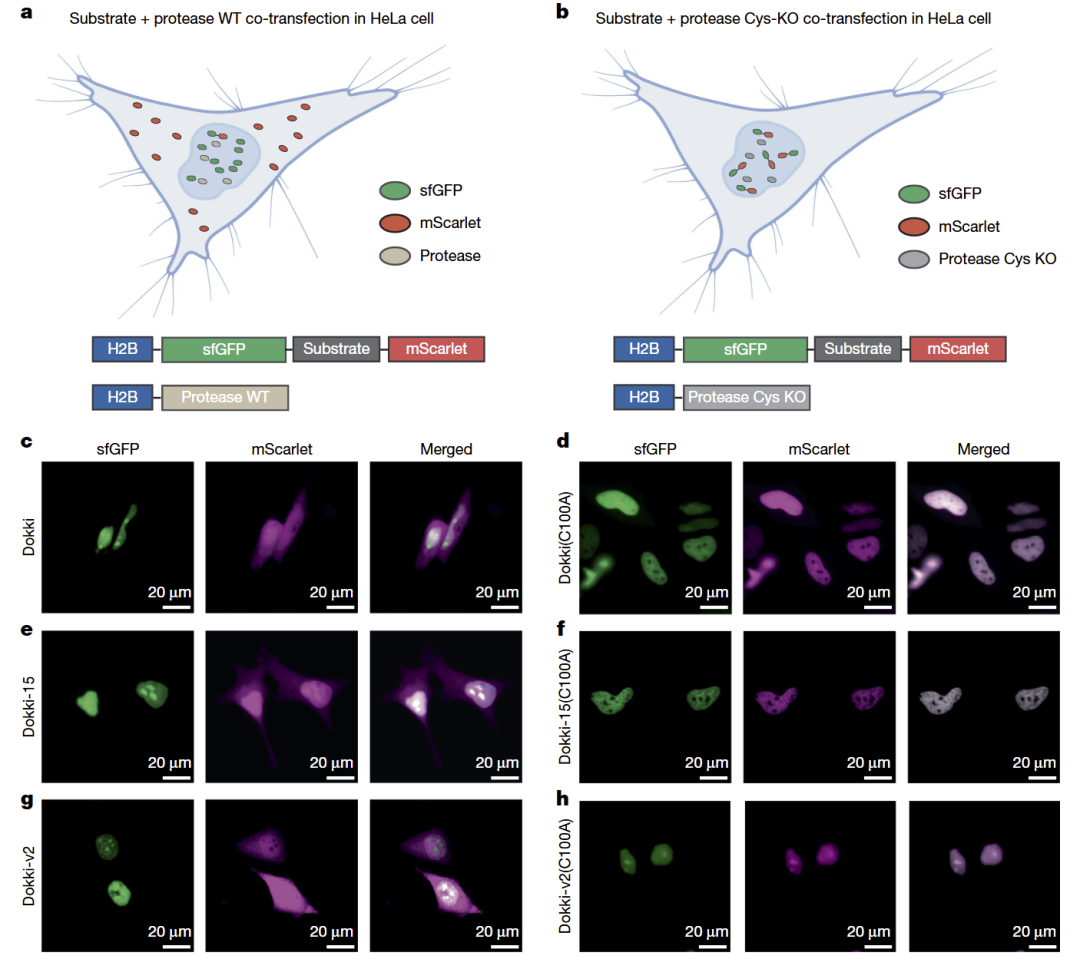
图5|从头设计半胱氨酸蛋白酶在哺乳动物细胞中的催化活性验证。
讨论
本研究证明,生成式蛋白质设计已经能够突破简单模型反应的限制,从头构建催化稳定肽键水解的人工半胱氨酸蛋白酶。研究人员仅利用天然酶中的关键催化原子作为几何参考,便成功生成了具有全新折叠结构、准确催化位点和底物序列选择性的人工酶。
这一研究的重要启示是,蛋白质整体结构预测的准确性并不必然意味着高催化效率。尽管设计结构与晶体结构达到接近原子级的一致性,活性位点的动态预组织和底物定位仍然决定着催化效率。通过少量局部突变即可将催化周转数提高58倍,也说明现有生成模型尚未充分捕获催化过程中复杂的构象和能量变化。
与天然蛋白酶相比,当前人工酶的底物结合界面相对有限,对目标肽键的稳定定位仍有不足。未来需要进一步结合催化过程的构象采样、过渡态稳定性评估和更大范围的底物界面设计,以提高人工酶的催化效率和适用范围。此外,设计蛋白酶已在哺乳动物细胞内表现出明确功能,说明其具有发展为可编程蛋白质切割工具的潜力。但针对内源性疾病相关蛋白的选择性切割、安全性及实际治疗效果,仍需要进一步验证。
整理 | DrugOne团队
参考资料
Choi, H., Bauer, M.S., Coventry, B. et al. De novo design of cysteine proteases. Nature (2026).
https://doi.org/10.1038/s41586-026-11143-w
内容为【DrugOne】公众号原创|转载请注明来源